Le papillon blanc est agréable à voir, mais ses chenilles peuvent réduire une feuille de chou à ses nervures. Pour éviter la mauvaise surprise à la récolte, on surveille les pontes, on couvre les plants et on intervient avant que la colonie ne prenne ses aises.
Papillon blanc, chou en vrac : l’enquête commence sous la feuille
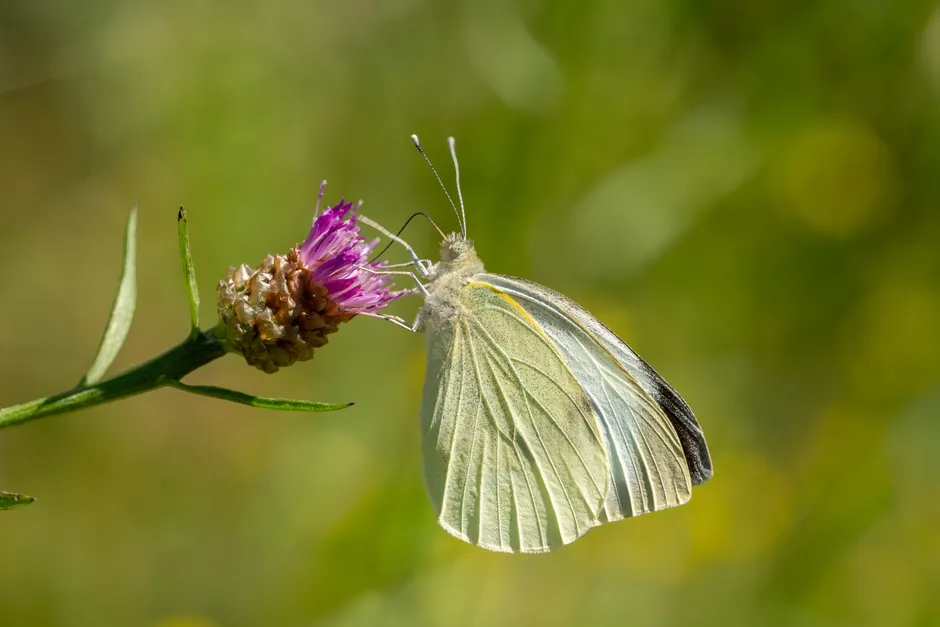
Photo de Chandan Chaurasia sur Unsplash.
La piéride du chou, Pieris brassicaeest un papillon blanc à crème dont les ailes antérieures portent une tache noire à l’extrémité. La femelle possède aussi plusieurs marques noires supplémentaires. La confusion reste possible avec la piéride de la rave et la piéride du navet : l’identification du papillon ne suffit donc pas toujours.
Le papillon adulte ne troue pas les feuilles. Les dégâts viennent des chenilles, qui consomment le feuillage des choux pommés, brocolis, choux-fleurs, choux de Bruxelles et choux frisés. Les œufs jaunes, finement striés, sont déposés sous les feuilles en groupes. Ils éclosent après environ 4 à 10 jours, puis les jeunes larves grossissent jusqu’à près de 4 centimètres. À ce stade, ça négocie sévère avec le chou, et le chou n’a pas beaucoup d’arguments.
D’avril à octobre, la chenille change de régime
Les adultes peuvent voler de mars à novembre. Dans un jardin, on observe souvent trois générations entre avril et octobre, mais la météo et la région peuvent modifier ce rythme : deux ou quatre générations sont aussi possibles. Les chenilles issues de la première génération proviennent de chrysalides ayant passé l’hiver.
Les périodes se chevauchent. Une nouvelle ponte peut donc apparaître alors que les chenilles de la génération précédente sont encore présentes. Une ponte repérée en mai ne signifie pas que le problème sera réglé en juin. Le calendrier de la piéride, comme celui des limaces, refuse obstinément de respecter nos plannings.
Le chou mène l’enquête, la plante ne bluffe pas
Photo de Dibakar Roy sur Unsplash.
Une plante ne reste pas forcément passive devant une ponte. L’article scientifique Phosphatidylcholines from Pieris brassicae eggs activate an immune response in Arabidopsispublié dans eLife en 2020, a étudié la réponse de l’arabette des dames, Arabidopsis thalianaà des molécules présentes dans les œufs de Pieris brassicae.
Les phosphatidylcholines identifiées dans cette étude ont été associées à une accumulation d’acide salicylique et de peroxyde d’hydrogène, à l’expression de gènes de défense et à une mort cellulaire localisée chez Arabidopsis. La portée du résultat reste précise : l’expérience concerne cette plante modèle, pas directement une planche de brocolis.
Une étude publiée dans Frontiers in Plant Science en 2015 a examiné la moutarde noire, Brassica nigraaprès le dépôt d’œufs de Pieris brassicae et de sécrétions associées à la ponte. La plante pouvait présenter une réponse nécrotique ou produire des composés volatils attirant des parasitoïdes du genre Trichogramma. La biologie végétale est donc plus fine qu’un simple duel entre une chenille affamée et une feuille.
Cette alerte végétale ne remplace pas l’inspection du revers des feuilles. Elle ne transforme pas un chou en forteresse et ne justifie pas de laisser une colonie entière finir le travail. Le potager reste un équilibre fragile, avec ses défenses, ses auxiliaires et ses petites catastrophes du mardi matin.
Le filet fait mouche, la main fait le reste
Photo de Mirtha Rodríguez Rojas sur Unsplash.
Un filet anti-insectes installé avant l’arrivée des femelles limite la ponte. Il doit couvrir toute la culture et rester fermé sur les côtés. Les bords, les attaches et les éventuels trous méritent une vérification régulière : une ouverture de quelques centimètres suffit à transformer la protection en invitation officielle.
Le filet n’agit plus sur les œufs déjà déposés. Pendant les périodes de vol, on examine donc le revers du feuillage tous les deux ou trois jours, avec une attention particulière à la fin du printemps, puis en juillet et en août. En cas de forte attaque, un passage quotidien devient parfois nécessaire.
Ponte repérée, récolte préservée
Retourner doucement les feuilles et rechercher les amas d’œufs jaunes.
Retirer les pontes avant l’éclosion, sans secouer les plants voisins.
Ramasser les jeunes chenilles dès leur apparition, avant qu’elles ne grossissent.
Examiner le cœur des choux et les feuilles basses, où les larves peuvent se dissimuler.
Le retrait manuel demande de la régularité, mais il évite de traiter toute la culture pour quelques individus. Ce n’est pas spectaculaire. C’est simplement plus fiable qu’une recette de vinaigre présentée comme une formule magique.
Quand le Bt entre en scène, sans jouer au bazooka
Si la pression devient forte et que le retrait manuel ne suffit plus, une préparation à base de Bacillus thuringiensis peut être envisagée uniquement lorsque son étiquette autorise l’usage prévu sur les choux. Cette bactérie agit après ingestion par les chenilles. Elle ne protège donc pas les œufs et doit viser les jeunes larves, avant qu’elles ne gagnent le cœur du chou.
La dose, le nombre d’applications, les cultures concernées et le délai avant récolte dépendent du produit utilisé. Aucun dosage universel ne remplace la notice. Cette matière active peut aussi atteindre d’autres chenilles sensibles : on traite les plants réellement atteints, pas tout le jardin par réflexe.
Les auxiliaires ne sont pas venus pour décorer
Photo de Alexandria Szakacs sur Unsplash.
La piéride nourrit aussi des parasitoïdes. Cotesia glomeratanotamment, pond dans les chenilles. Ses larves se développent à l’intérieur de leur hôte, puis sortent et forment des cocons blancs autour de son corps.
Une chenille immobile entourée de petits cocons blancs a donc souvent déjà été parasitée. Elle ne repartira pas à l’assaut du chou, tandis que les cocons peuvent donner une nouvelle génération d’auxiliaires. Les retirer serait dommage. On laisse aussi quelques feuilles atteintes lorsque la culture peut le supporter, et on évite les traitements non ciblés.
Les associations de cultures peuvent diversifier une parcelle et fournir des ressources aux insectes, mais une plante compagne ne remplace ni un filet bien posé ni l’inspection des feuilles. Le voisin qui affirme le contraire avec une branche de menthe à la main mérite peut-être un café, pas encore une publication scientifique.
Le purin miracle peut rester au placard
Photo de Lucas George Wendt sur Unsplash.
Le purin de tanaisie ou d’absinthe est parfois présenté comme un répulsif contre la piéride. Même dans ce cas, il ne supprime pas les œufs déjà présents et son effet dépend de la préparation, de la concentration, de la météo et du moment d’application. Une odeur forte n’est pas une stratégie complète.
Le mot naturel ne signifie pas automatiquement sélectif ou inoffensif pour les insectes non ciblés. Une pulvérisation mal dosée peut marquer les feuilles et donner une impression de protection sans empêcher une nouvelle ponte. Pour un jardin bio cohérent, on construit donc la méthode autour de gestes vérifiables : couvrir, observer, retirer, puis cibler si nécessaire.
La question des produits non ciblés dépasse d’ailleurs la seule piéride. Une étude expérimentale publiée dans PeerJ en 2018 a exposé des chenilles de Pieris brassicae à des plants de chou arrosés avec 0, 1, 10, 100 ou 200 parties par milliard d’imidaclopride. La digestibilité du chou et la réaction des larves à une attaque simulée n’ont pas changé, mais la durée de la nymphose et la taille des adultes ont diminué chez les papillons exposés. Ce protocole ne décrit pas à lui seul le fonctionnement d’un potager, mais il rappelle qu’une exposition sublétale peut produire des effets mesurables.
Le calendrier, ce vieux farceur
Photo de Anna Evans sur Unsplash.
Pour les choux, la stratégie tient en quatre verbes : couvrir, observer, retirer, cibler. On couvre avant les vols, on observe le dessous des feuilles, on retire œufs et chenilles, puis on réserve le Bacillus thuringiensis aux situations où la pression le justifie et où l’étiquette autorise l’usage prévu.
Le chou palmierle brocoli et le chou-fleur n’ont pas besoin d’un jardin stérile pour produire. Ils ont besoin d’une intervention assez précoce pour éviter que quelques pontes ne deviennent une armée. Et comme la météo déjoue tous les calendriers, le dernier mot revient encore à la feuille retournée ce matin. Qui a dit que le jardinage bio manquait de suspense?
Sources et références scientifiques
Andresen JL, Birkemoe T, Jensen KA, Morozova V, Oughton DH.. Radiocaesium and radiostrontium transfer to an insect herbivore and an insect detritivore through holometabolous development: A comparison between the cabbage butterfly (Pieris brassicae) and the black soldier fly (Hermetia illucens).. The Science of the total environment. 2025. DOI: 10.1016/j.scitotenv.2025.178422 · PMID: 39824117. (résumé scientifique structuré; texte intégral non fourni)
Phosphatidylcholines from Pieris brassicae eggs activate an immune response in Arabidopsis – PMC. eLife. DOI: 10.7554/elife.60293 · PMID: 32985977.
Akoka S, Barantin L, Trierweiler M. Concentration measurement by proton NMR using the ERETIC method. Analytical Chemistry. 1999;71:2554-2557. doi: 10.1021/ac981422i. [DOI] [PubMed] [Google Scholar]. doi:10.1021/ac981422i.
Aktas M, Wessel M, Hacker S, Klüsener S, Gleichenhagen J, Narberhaus F. Phosphatidylcholine biosynthesis and its significance in Bacteria interacting with eukaryotic cells. European Journal of Cell Biology. 2010;89:888-894. doi: 10.1016/j.ejcb.2010.06.013. [DOI] [PubMed] [Google Scholar]. doi:10.1016/j.ejcb.2010.06.013.
Alborn HT, Turlings TCJ, Jones TH, Stenhagen G, Loughrin JH, Tumlinson JH. An elicitor of plant volatiles from beet armyworm oral secretion. Science. 1997;276:945-949. doi: 10.1126/science.276.5314.945. [DOI] [Google Scholar]. doi:10.1126/science.276.5314.945.
Balsgart NM, Mulbjerg M, Guo Z, Bertelsen K, Vosegaard T. High throughput identification and quantification of phospholipids in complex mixtures. Analytical Chemistry. 2016;88:2170-2176. doi: 10.1021/acs.analchem.5b03798. [DOI] [PubMed] [Google Scholar]. doi:10.1021/acs.analchem.5b03798.
Bellande K, Bono J-J, Savelli B, Jamet E, Canut H. Plant lectins and lectin Receptor-Like kinases: how do they sense the outside? International Journal of Molecular Sciences. 2017;18:1164. doi: 10.3390/ijms18061164. [DOI] [PMC free article] [PubMed] [Google Scholar]. doi:10.3390/ijms18061164.
Blenn B, Bandoly M, Küffner A, Otte T, Geiselhardt S, Fatouros NE, Hilker M. Insect egg deposition induces indirect defense and epicuticular wax changes in Arabidopsis thaliana. Journal of Chemical Ecology. 2012;38:882-892. doi: 10.1007/s10886-012-0132-8. [DOI] [PubMed] [Google Scholar]. doi:10.1007/s10886-012-0132-8.
Blomquist GJ, Borgeson CE, Vundla M. Polyunsaturated fatty acids and eicosanoids in insects. Insect Biochemistry. 1991;21:99-106. doi: 10.1016/0020-1790(91)90069-Q. [DOI] [Google Scholar]. doi:10.1016/0020-1790(91)90069-Q.
Boller T, Felix G. A renaissance of elicitors: perception of microbe-associated molecular patterns and danger signals by pattern-recognition receptors. Annual Review of Plant Biology. 2009;60:379-406. doi: 10.1146/annurev.arplant.57.032905.105346. [DOI] [PubMed] [Google Scholar]. doi:10.1146/annurev.arplant.57.032905.105346.
Bonnet C, Lassueur S, Ponzio C, Gols R, Dicke M, Reymond P. Combined biotic stresses trigger similar transcriptomic responses but contrasting resistance against a chewing herbivore in Brassica nigra. BMC Plant Biology. 2017;17:127. doi: 10.1186/s12870-017-1074-7. [DOI] [PMC free article] [PubMed] [Google Scholar]. doi:10.1186/s12870-017-1074-7.
Boutrot F, Zipfel C. Function, discovery, and exploitation of plant pattern recognition receptors for Broad-Spectrum disease resistance. Annual Review of Phytopathology. 2017;55:257-286. doi: 10.1146/annurev-phyto-080614-120106. [DOI] [PubMed] [Google Scholar]. doi:10.1146/annurev-phyto-080614-120106.
Bridges RG. Choline metabolism in insects. In: Treherne J. E, Berridge M. J, Wigglesworth V. B, editors. Advances in Insect Physiology. Elsevier; 1972. pp. 51-110. [DOI] [Google Scholar].
Brodersen P, Petersen M, Pike HM, Olszak B, Skov S, Odum N, Jørgensen LB, Brown RE, Mundy J. Knockout of Arabidopsis accelerated-cell-death11 encoding a sphingosine transfer protein causes activation of programmed cell death and defense. Genes & Development. 2002;16:490-502. doi: 10.1101/gad.218202. [DOI] [PMC free article] [PubMed] [Google Scholar]. doi:10.1101/gad.218202.
Role of Large Cabbage White butterfly male-derived compounds in elicitation of direct and indirect egg-killing defenses in the black mustard – PMC. Frontiers in plant science. DOI: 10.3389/fpls.2015.00794 · PMID: 26483811.
Acevedo F. E., Rivera-Vega L. J., Chung S. H., Ray S., Felton G. W. (2015). Cues from chewing insects – the intersection of DAMPs, HAMPs, MAMPs and effectors. Curr. Opin. Plant Biol. 26 80-86. 10.1016/j.pbi.2015.05.029 [DOI] [PubMed] [Google Scholar]. doi:10.1016/j.pbi.2015.05.029.
Andersson J., Borg-Karlson A. K., Wiklund C. (2000). Sexual cooperation and conflict in butterflies: a male-transferred anti-aphrodisiac reduces harassment of recently mated females. Proc. R. Soc. B Biol. Sci. 267 1271-1275. 10.1098/rspb.2000.1138 [DOI] [PMC free article] [PubMed] [Google Scholar]. doi:10.1098/rspb.2000.1138.
Andersson J., Borg-Karlson A. K., Wiklund C. (2003). Antiaphrodisiacs in pierid butterflies: a theme with variation! J. Chem. Ecol. 29 1489-1499. 10.1023/A:1026278531806 [DOI] [PubMed] [Google Scholar]. doi:10.1023/A:1026278531806.
Aplin R. T., D’Arcy Ward R., Rothschild M. (1975). Examination of the large white and small white butterflies (Pieris spp.) for the presence of mustard oils and mustard oil glycosides. J. Entomol. 50 73-78. 10.1111/j.1365-3032.1975.tb00094.x [DOI] [Google Scholar]. doi:10.1111/j.1365-3032.1975.tb00094.x.
Avila F. W., Sirot L. K., Laflamme B. A., Rubinstein C. D., Wolfner M. F. (2011). Insect Seminal Fluid Proteins: identification and Function. Annu. Rev. Entomol. 56 21-40. 10.1146/annurev-ento-120709-144823 [DOI] [PMC free article] [PubMed] [Google Scholar]. doi:10.1146/annurev-ento-120709-144823.
Bell E., Creelman R. A., Mullet J. E. (1995). A chloroplast lipoxygenase is required for wound-induced jasmonic acid accumulation in Arabidopsis. Proc. Natl. Acad. Sci. U.S.A. 92 8675-8679. 10.1073/pnas.92.19.8675 [DOI] [PMC free article] [PubMed] [Google Scholar]. doi:10.1073/pnas.92.19.8675.
Blenn B., Bandoly M., Kuffner A., Otte T., Geiselhardt S., Fatouros N. E., et al. (2012). Insect egg deposition induces indirect defense and epicuticular wax changes in Arabidopsis thaliana. J. Chem. Ecol. 38 882-892. 10.1007/s10886-012-0132-8 [DOI] [PubMed] [Google Scholar]. doi:10.1007/s10886-012-0132-8.
Bonaventure G., Vandoorn A., Baldwin I. T. (2011). Herbivore-associated elicitors: FAC signaling and metabolism. Trends Plant Sci. 16 294-299. 10.1016/j.tplants.2011.01.006 [DOI] [PubMed] [Google Scholar]. doi:10.1016/j.tplants.2011.01.006.
Bruessow F., Gouhier-Darimont C., Buchala A., Metraux J. P., Reymond P. (2010). Insect eggs suppress plant defence against chewing herbivores. Plant J. 62 876-885. 10.1111/j.1365-313X.2010.04200.x [DOI] [PubMed] [Google Scholar]. doi:10.1111/j.1365-313X.2010.04200.x.
Colazza S., Cusumano A., Lo Giudice D., Peri E. (2014). Chemo-orientation responses in hymenopteran parasitoids induced by substrate-borne semiochemicals. BioControl 59 1-17. 10.1007/s10526-013-9546-7 [DOI] [Google Scholar]. doi:10.1007/s10526-013-9546-7.
Cusumano A., Weldegergis B. T., Colazza S., Dicke M., Fatouros N. E. (2015). Attraction of egg-killing parasitoids toward induced plant volatiles in a multi-herbivore context. Oecologia 179 163-174. 10.1007/s00442-015-3325-3 [DOI] [PubMed] [Google Scholar]. doi:10.1007/s00442-015-3325-3.
David W. A. L., Gardiner B. O. C. (1962). Oviposition and the hatching of the eggs of Pieris brassicae (L.) in a laboratory culture. Bull. Entomol. Res. 53 91-109. 10.1017/S0007485300048227 [DOI] [Google Scholar]. doi:10.1017/S0007485300048227.
Larval exposure to the neonicotinoid imidacloprid impacts adult size in the farmland butterfly Pieris brassicae – PMC. PeerJ. DOI: 10.7717/peerj.4772 · PMID: 29796343.
Ahmad, Ansari & Ahmad (2013).Ahmad S, Ansari MS, Ahmad N. Acute toxicity and sublethal effects of the neonicotinoid imidacloprid on the fitness of Helicoverpa armigera (Lepidoptera: Noctuidae) International Journal of Tropical Insect Science. 2013;33(4):264-275. doi: 10.1017/S1742758413000246. [DOI] [Google Scholar]. doi:10.1017/S1742758413000246.
Baron et al. (2017b).Baron GL, Jansen VAA, Brown MJF, Raine NE. Pesticide reduces bumblebee colony establishment and increases probability of population extinction. Nature Ecology & Evolution. 2017b;1:1308-1316. doi: 10.1038/s41559-017-0260-1. [DOI] [PMC free article] [PubMed] [Google Scholar]. doi:10.1038/s41559-017-0260-1.
Baron, Raine & Brown (2017).Baron GL, Raine NE, Brown MJF. General and species-specific impacts of a neonicotinoid insecticide on the ovary development and feeding of wild bumblebee queens. Proceedings of the Royal Society B: Biological Sciences. 2017;284 doi: 10.1098/rspb.2017.0123. Article 20170123. [DOI] [PMC free article] [PubMed] [Google Scholar]. doi:10.1098/rspb.2017.0123.
Bauerfeind & Fischer (2008).Bauerfeind SS, Fischer K. Maternal body size as a morphological constraint on egg size and fecundity in butterflies. Basic and Applied Ecology. 2008;9:443-451. doi: 10.1016/j.baae.2007.05.005. [DOI] [Google Scholar]. doi:10.1016/j.baae.2007.05.005.
Blacquière et al. (2012).Blacquière T, Smagghe G, Van Gestel CAM, Mommaerts V. Neonicotinoids in bees: a review on concentrations, side-effects and risk assessment. Ecotoxicology. 2012;21:973-992. doi: 10.1007/s10646-012-0863-x. [DOI] [PMC free article] [PubMed] [Google Scholar]. doi:10.1007/s10646-012-0863-x.
Bonmatin et al. (2005).Bonmatin JM, Moineau I, Charvet R, Collin ME, Fleche C, Bengsch ER. Behavior of imidacloprid in fields. In: Lichtfourse E, Schwarzbauer J, Robert D, editors. Toxicity for honey bees in environmental chemistry: green chemistry and pollutants in ecosytems. Springer; New York: 2005. [Google Scholar].
Bonmatin et al. (2015).Bonmatin J-M, Giorio C, Girolami V, Goulson D, Kreutzweiser DP, Krupke C, Liess M, Long E, Marzaro M, Mitchell EAD, Noome DA, Simon-Delso N. Tapparo, A. Environmental fate and exposure; neonicotinoids and fipronil. Environmental Science & Pollution Research. 2015;22(1):35-67. doi: 10.1007/s11356-014-3332-7. [DOI] [PMC free article] [PubMed] [Google Scholar]. doi:10.1007/s11356-014-3332-7.
Botías et al. (2016).Botías C, David A, Hill E, Goulson D. Contamination of wild plants near neonicotinoid seed-treated crops, and implications for non-target invertebrates. Science of the Total Environment. 2016;566-567:269-278. doi: 10.1016/j.scitotenv.2016.05.065. [DOI] [PubMed] [Google Scholar]. doi:10.1016/j.scitotenv.2016.05.065.
Botías et al. (2015).Botías C, David A, Horwood J, Abdul-Sada A, Nicholls E, Hill E, Goulson D. Neonicotinoid residues in wildflowers, a potential route of chronic exposure for bees. Environmental Science & Technology. 2015;49:12731-12740. doi: 10.1021/t.5b03459. [DOI] [PubMed] [Google Scholar]. doi:10.1021/acs.est.5b03459.
Brereton et al. (2011).Brereton TM, Roy DB, Middlebrook I, Botham M, Warren M. The development of butterfly indicators in the United Kingdom and assessments in 2010. Journal of Insect Conservation. 2011;15:139-151. doi: 10.1007/s10841-010-9333-z. [DOI] [Google Scholar]. doi:10.1007/s10841-010-9333-z.
Buchholz & Nauen (2002).Buchholz A, Nauen R. Translocation and translaminar bioavailability of two neonicotinoid insecticides after foliar application to cabbage and cotton. Pest Management Science. 2002;58:10-16. doi: 10.1002/ps.401. [DOI] [PubMed] [Google Scholar]. doi:10.1002/ps.401.
David et al. (2016).David A, Botías C, Abdul-Sada A, Nicholls E, Rotheray EL, Hill EM, Goulson D. Widespread contamination of wildflower and bee-collected pollen with complex mixtures of neonicotinoids and fungicides commonly applied to crops. Environment International. 2016;88:169-178. doi: 10.1016/j.envint.2015.12.011. [DOI] [PubMed] [Google Scholar]. doi:10.1016/j.envint.2015.12.011.
Bruno Nunez. Comment lutter bio contre la piéride du chou?. 2014.
Contributeurs aux projets Wikimedia. espèce de lépidoptère du genre Pieris. 2005.
[modifier | modifier le code].
Notes et références.
1 2 3 (fr) Tristan Lafranchis, Les Papillons de jour de France, Belgique et Luxembourg et leurs chenilles, Mèze, Éditions Biotope, 2000, 448 p. (ISBN 2-9510379-2-9), p. 148.
↑ Papillons de Poitou-Charentes.
1 2 3 FUNET Tree of Life, consulté le 9 janvier 2020..
↑ (en) R. G Van Driesche, C Nunn, N Kreke, B Goldstein et J Benson, « Laboratory and field host preferences of introduced Cotesia spp. parasitoids (Hymenoptera: Braconidae) between native and invasive Pieris butterflies », Biological Control, 2003, p. 214-221.
↑ (en) learn about Butterflies..
↑ Linnaeus, 1758, Syst. Nat. (Edn 10) 1: 467..
(fr) Tristan Lafranchis, Les Papillons de jour de France, Belgique et Luxembourg et leurs chenilles, Mèze, Éditions Biotope, 2000, 448 p. (ISBN 2-9510379-2-9), p. 148.
FUNET Tree of Life, consulté le 9 janvier 2020..
Piéride du chou : la reconnaître et l'éliminer.
Piéride du chou : un joli papillon… mais un fléau pour vos choux. 2019.
Eric est jardinier passionné depuis 22 ans. Il partage régulièrement ses conseils et astuces de jardinage sur son blog "Jardin-Bio", pour aider les débutants comme les jardiniers confirmés à entretenir et faire évoluer leur jardin.