Une graine ne lève pas parce qu’on l’a enterrée avec conviction. En 2026, le trio eau, chaleur, lumière reste le vrai chef d’orchestre, avec une météo qui improvise parfois un solo de trompette.
Le jardin bio ne fournit pas de protocole unique. Le label AB encadre des pratiques de production biologique, mais il ne promet ni levée uniforme ni rendement fixe. Une graine doit absorber de l’eau, sortir de dormance et installer sa plantule dans des conditions adaptées à son espèce.
Le semis reste une manière économique de multiplier les plants et d’essayer des variétés qui ne sont pas toujours disponibles en godet. Encore faut-il éviter le grand classique : semer trop tôt, arroser trop fort, puis accuser la lune, le voisin ou le sachet de graines. La levée commence par un réglage, pas par un acte de foi.
Une graine n’est pas un bouton poussoir

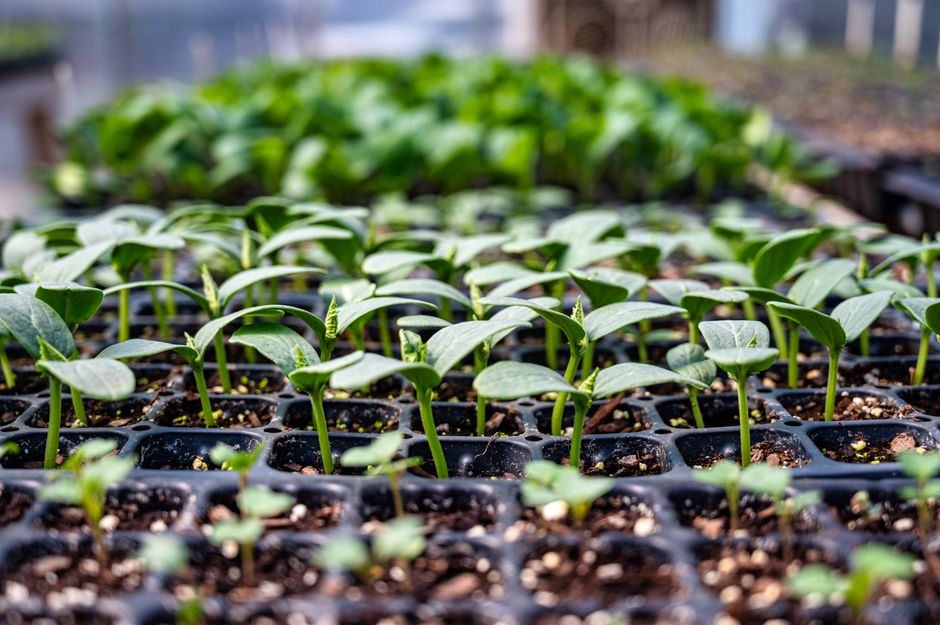
Au début de la germination, la graine absorbe de l’eau, active ses enzymes et mobilise ses réserves. La radicule apparaît, puis la plantule doit installer ses premières feuilles et produire son énergie grâce à la lumière.
Les hormones participent à ce passage. L’acide abscissique, ou ABA, entretient généralement la dormance, tandis que les gibbérellines, ou GA, favorisent la sortie de dormance et la croissance de la plantule.
Une étude publiée dans BMC Plant Biology en 2026 a comparé deux variétés de quinoa soumises à une sécheresse simulée avec 20 % de PEG-6000. Chez LL1, plusieurs indicateurs de germination ont diminué. Chez LQ18, la baisse n’était pas statistiquement significative pour ces mêmes indicateurs. Les auteurs ont aussi observé des effets sur la hauteur, la longueur de la radicule et la biomasse, surtout chez LL1.
Ce résultat ne donne pas une dose de PEG à verser dans un semis domestique. Il rappelle plutôt que deux variétés d’une même espèce peuvent réagir différemment au manque d’eau. Au jardin, une levée irrégulière peut donc venir de la semence, du milieu ou des deux.
Le trio qui fait lever les foules
Eau : juste humide, pas noyée
Le substrat doit rester humide sur la profondeur où se trouvent les graines, sans devenir une éponge détrempée. Un excès d’eau réduit l’air disponible dans les pores du terreau et augmente le risque de pourriture. À l’inverse, une surface qui sèche vite peut interrompre la germination des graines très fines.
Arrosez doucement avec une pomme fine ou par capillarité, puis observez le contenant. Un godet derrière une fenêtre chaude peut sécher en quelques heures, alors qu’une terrine dans une pièce fraîche conservera son humidité plus longtemps. L’arrosage une fois par semaine sonne creux dans ces deux situations, puisque la météo n’a signé aucun contrat.
Chaleur : le calendrier ne lit pas les sachets
La période indiquée sur un paquet ne garantit pas que le sol est assez chaud. Les légumes frileux peuvent démarrer sous abri, dans un terreau fin et drainant, tandis que les semis en place attendent une terre réchauffée. Une carotte semée dans un sol froid ne devient pas plus pressée parce que le calendrier affiche avril.
La profondeur compte aussi. Les graines fines se placent souvent en surface ou sous une couche très mince de terreau. Les graines plus grosses peuvent être enterrées davantage, mais la profondeur dépend de l’espèce et des indications du sachet. Trop profonde, une graine consomme ses réserves avant d’atteindre la lumière. Elle rame, puis abandonne.
Lumière : le plant se redresse ou file
Après la levée, une fenêtre lumineuse ne suffit pas toujours si le contenant est loin de la vitre ou installé dans une pièce très chaude. Une lumière faible associée à une température élevée produit des tiges longues et fragiles. Rapprocher les plants de la lumière, espacer les godets et réduire légèrement la chaleur limitent ce phénomène.
Une étude publiée dans Genes en 2026 a suivi cinq stades de germination et d’installation du plant chez le carthame. Les analyses ont associé plusieurs étapes aux voies de la photosynthèse et aux réponses hormonales. Les auteurs proposent que le troisième stade corresponde à une transition vers une meilleure capacité de capture de la lumière. Le travail porte sur le carthame en conditions contrôlées, pas sur les tomates du rebord de fenêtre, mais la conséquence pratique reste lisible : après l’ouverture des cotylédons, la lumière devient une affaire de croissance.
Avant les premières feuilles, surveillez surtout l’humidité et la température. Après leur apparition, la lumière et l’aération prennent le relais.
Vieux sachets, jeune espoir

Un sachet ancien mérite un test avant de remplir toute une planche. Placez 10 graines entre deux feuilles de papier absorbant humide, gardez l’ensemble à une température adaptée à l’espèce et observez régulièrement les radicules. Si moins de 7 graines sur 10 lèvent, semez plus dense ou renouvelez le lot. Cette compensation ne transforme pas une semence vieillissante en plant vigoureux.
- Comptez 10 graines représentatives du sachet.
- Placez-les dans un papier humide, sans les noyer.
- Conservez le test dans un endroit adapté à l’espèce.
- Notez le nombre de graines levées et le délai d’apparition des radicules.
- Comparez le résultat avec la date et les conditions indiquées sur le paquet.
Ce test ne remplace pas un essai au terreau. Certaines graines ont besoin de lumière, d’une alternance de températures ou d’une période de froid. Il évite toutefois de rater en beauté un semis de printemps avec un lot déjà fatigué.
Le sol vivant ne se repasse pas au fer

Pour une graine, le meilleur substrat n’est pas forcément le plus riche. Un terreau de semis fin, léger et drainant facilite le contact entre la graine et l’humidité. Au potager, une surface débarrassée des grosses mottes et légèrement tassée après le semis évite les poches d’air autour des graines.
Le compost mûr peut améliorer la structure générale du sol, mais un apport frais ou mal décomposé complique la vie des jeunes racines. Les plantules possèdent déjà des réserves dans la graine. Un engrais concentré au moment de la levée n’accélère donc pas mécaniquement le processus et peut endommager les racines. Une déception, ce compost mal aéré transformé en solution universelle.
Le paillage intervient surtout après la levée ou autour de plants déjà installés. Sur une ligne de semis très fin, une couche épaisse peut gêner la sortie des radicules. Le paillage protège le sol, mais il ne remplace ni le contact entre la graine et la terre ni le suivi de l’humidité. Spoiler : le paillage ne suffit pas toujours.
Biochar : charbon de bois, pas poudre de perlimpinpin

Le biochar demande un essai séparé. Une étude publiée dans Plants en 2026 a testé des extraits aqueux de biochar fabriqué avec des écorces d’orange sur du blé dur et du sarrasin, en conditions contrôlées. L’écorce non traitée a bloqué la germination des deux espèces, avec 0 % de germination. À 250 °C, l’indice de germination du blé dur est passé de 54,21 % dans le témoin à 47,2 %.
À environ 350 °C, les extraits ont permis une germination supérieure à 96 % chez le blé dur et de 100 % chez le sarrasin après six jours. Ces chiffres concernent des extraits préparés au laboratoire, pas une dose de biochar à répandre dans un potager. La température de pyrolyse, la matière première et les composés solubles changent le résultat.
Le biochar peut donc entrer dans une réflexion sur le sol, mais pas sous la forme d’une promesse automatique de rendement. Ça négocie sévère avec la chimie du sol, même quand le sac affiche une jolie étiquette verte.
Les exceptions sortent du rang

Le riz sauvage halophyte Oryza coarctata impose son propre règlement. Un protocole publié dans Bio-protocol en 2025 décrit la germination et l’installation de plantules en milieu stérile ou sur substrat, avec un suivi des hormones ABA et GA. Cette espèce vivace supporte la salinité et la submersion grâce à des feuilles épaisses et à des glandes à sel.
Le protocole concerne une espèce sauvage des zones côtières d’Asie du Sud-Est, utilisée comme ressource pour la recherche sur la tolérance du riz au sel et à la submersion. Il ne fournit pas une recette à copier pour une laitue. Il rappelle une règle que les sachets de graines résument parfois trop vite : le bon réglage dépend toujours de la biologie de la plante.
La météo, ce vieux collègue qui change le planning
Les semis sous abri permettent de démarrer certaines cultures avant la période favorable, à condition d’acclimater progressivement les plants. Sortez-les quelques jours à l’abri du vent et du soleil brutal avant la plantation. Une sortie directe d’une pièce chaude vers un plein soleil froid, c’est la version potagère du réveil sans café.
Pour les légumes sensibles au froid, l’installation en pleine terre attend les dernières gelées locales. La mi-mai reste un repère utilisé dans de nombreuses régions françaises, mais elle ne remplace pas l’observation du terrain. Un sol détrempé, une nuit froide ou une période venteuse peuvent justifier quelques jours d’attente.
Le même raisonnement vaut pour les semis de février 2026. Sous abri, on gagne du temps, mais on ne supprime ni le besoin de lumière, ni la ventilation, ni la place nécessaire aux plants. Semer tôt n’est utile que si les plants peuvent rester solides jusqu’à leur plantation.
La levée se lit comme un carnet de bord

Notez la date du semis, la variété, le substrat, la température approximative et la date des premières levées. Ces quelques lignes aident à distinguer une graine lente d’un semis raté, un manque d’eau d’un excès d’humidité, ou une lumière insuffisante d’une température trop élevée.
Observez aussi l’écart entre les graines. Une levée groupée indique des conditions régulières. Des apparitions étalées peuvent signaler une profondeur inégale, un lot hétérogène ou une humidité mal répartie. La main verte de la rédac a encore raté ses radis au printemps dernier, mais le carnet, lui, n’a pas oublié pourquoi.
Semer, c’est parier sur l’avenir, avec une mise de départ modeste et une météo qui adore modifier les règles. Quand l’eau reste maîtrisée, que la chaleur correspond à l’espèce et que la lumière arrive au bon moment, les graines ont une chance honnête de jouer leur partie. Après, les limaces demanderont probablement une réunion de crise.
Sources et références scientifiques
- Development of a Rapid and Efficient Protocol for Seed Germination and Seedling Establishment of Oryza coarctata – PMC. Bio-protocol. DOI: 10.21769/bioprotoc.5203 · PMID: 40028020.
- Readers should cite both the Bio-protocol article and the original research article where this protocol was used..
- 1. Chowrasia S., Rawal H. C., Mazumder A., Gaikwad K., Sharma T. R., Singh N. K. and Mondal T. K.(2018). Oryza coarctata Roxb. Mondal, T. K. and Henry, R. J.(Eds.) The Wild Oryza Genomes. Springer International Publishing. 87-104. 10.1007/978-3-319-71997-9_8 [DOI] [Google Scholar]. doi:10.1007/978-3-319-71997-9_8.
- 2. Bansal J., Gupta K., Rajkumar M. S., Garg R. and Jain M.(2020). Draft genome and transcriptome analyses of halophyte rice Oryza coarctata provide resources for salinity and submergence stress response factors. Physiol Plant. 173(4): 1309 1322 1322. 10.1111/ppl.13284 [DOI] [PubMed] [Google Scholar]. doi:10.1111/ppl.13284.
- 3. Zhao H., Wang W., Yang Y., Wang Z., Sun J., Yuan K., Rabbi S. M. H. A., Khanam M., Kabir M. S., Seraj Z. I., et al.(2023). A high-quality chromosome-level wild rice genome of Oryza coarctata. Sci Data. 10(1): 701 10.1038/s41597-023-02594-1 [DOI] [PMC free article] [PubMed] [Google Scholar]. doi:10.1038/s41597-023-02594-1.
- 4. Chowrasia S., Nishad J., Pandey R. and Mondal T. K.(2021). Oryza coarctata is a triploid plant with initial events of C4 photosynthesis evolution. Plant Sci. 308: 110878 10.1016/j.plantsci.2021.110878 [DOI] [PubMed] [Google Scholar]. doi:10.1016/j.plantsci.2021.110878.
- 5. Mondal T. K., Rawal H. C., Gaikwad K., Sharma T. R. and Singh N. K.(2017). First de novo draft genome sequence of Oryza coarctata, the only halophytic species in the genus Oryza. F1000Research. 6: 1750 10.12688/f1000research.12414.1 [DOI] [PMC free article] [PubMed] [Google Scholar]. doi:10.12688/f1000research.12414.1.
- 6. Bansal J., Gupta K., Rajkumar M. S., Garg R. and Jain M.(2020). Draft genome and transcriptome analyses of halophyte rice Oryza coarctata provide resources for salinity and submergence stress response factors. Physiol Plant. 173(4): 1309 1322 1322. 10.1111/ppl.13284 [DOI] [PubMed] [Google Scholar]. doi:10.1111/ppl.13284.
- 7. Yao Q., Zheng X., Zhou G. and Zhang J.(2024). SGR-YOLO: a method for detecting seed germination rate in wild rice. Front Plant Sci. 14: e1305081. 10.3389/fpls.2023.1305081 [DOI] [PMC free article] [PubMed] [Google Scholar]. doi:10.3389/fpls.2023.1305081.
- 8. Rodríguez Coca L. I., García González M. T., Gil Unday Z., Jiménez Hernández J., Rodríguez Jáuregui M. M. and Fernández Cancio Y.(2023). Effects of Sodium Salinity on Rice(Oryza sativa L.) Cultivation: A Review. Sustainability. 15(3): 1804 10.3390/su15031804 [DOI] [Google Scholar]. doi:10.3390/su15031804.
- 9. Teshome D. T., Zharare G. E. and Naidoo S.(2020). The Threat of the Combined Effect of Biotic and Abiotic Stress Factors in Forestry Under a Changing Climate. Front Plant Sci. 11: e601009. 10.3389/fpls.2020.601009 [DOI] [PMC free article] [PubMed] [Google Scholar]. doi:10.3389/fpls.2020.
- 10. Liu X., Feike T., Shao L., Sun H., Chen S. and Zhang X.(2016). Effects of saline irrigation on soil salt accumulation and grain yield in the winter wheat-summer maize double cropping system in the low plain of North China. J Integr Agric. 15(12): 2886 2898 2898. 10.1016/s2095-3119(15)61328-4 [DOI] [Google Scholar]. doi:10.1016/s2095-3119(15)61328-4.
- 11. Khan M. S., Akther T., Mubarak Ali D. and Hemalatha S.(2019). An investigation on the role of salicylic acid alleviate the saline stress in rice crop(Oryza sativa(L)). Biocatal Agric Biotechnol. 18: 101027 10.1016/j.bcab.2019.101027 [DOI] [Google Scholar]. doi:10.1016/j.bcab.2019.101027.
- Transcriptome Analysis of lncRNA and mRNA Expression Profiles During Safflower (Carthamus tinctorius) Seed Germination and Seedling Establishment – PMC. Genes. DOI: 10.3390/genes17070753 · PMID: 42510793.
- 1.Mani V., Lee S.K., Yeo Y., Hahn B.S. A Metabolic Perspective and Opportunities in Pharmacologically Important Safflower. Metabolites. 2020;10:253. doi: 10.3390/metabo10060253. [DOI] [PMC free article] [PubMed] [Google Scholar]. doi:10.3390/metabo10060253.
- 2.Liu L., Guan L.-L., Yang Y.-X. A Review of Fatty Acids and Genetic Characterization of Safflower (Carthamus tinctorius L.) Seed Oil. World J. Tradit. Chin. Med. 2016;2:48-52. doi: 10.15806/j.issn.2311-8571.2016.0006. [DOI] [Google Scholar]. doi:10.15806/j.issn.2311-8571.2016.0006.
- 3.Zhou X., Tang L., Xu Y., Zhou G., Wang Z. Towards a better understanding of medicinal uses of Carthamus tinctorius L. in traditional Chinese medicine: A phytochemical and pharmacological review. J. Ethnopharmacol. 2014;151:27-43. doi: 10.1016/j.jep.2013.10.050. [DOI] [PubMed] [Google Scholar]. doi:10.1016/j.jep.2013.10.050.
- 4.Gecgel U., Demirci M., Esendal E., Tasan M. Fatty Acid Composition of the Oil from Developing Seeds of Different Varieties of Safflower (Carthamus tinctorius L.) J. Am. Oil Chem. Soc. 2007;84:47-54. doi: 10.1007/s11746-006-1007-3. [DOI] [Google Scholar]. doi:10.1007/s11746-006-1007-3.
- 5.Yesilyurt M.K., Cesur C., Aslan V., Yilbasi Z. The production of biodiesel from safflower (Carthamus tinctorius L.) oil as a potential feedstock and its usage in compression ignition engine: A comprehensive review. Renew. Sustain. Energy Rev. 2020;119:109574. doi: 10.1016/j.rser.2019.109574. [DOI] [Google Scholar]. doi:10.1016/j.rser.2019.109574.
- 6.Asgarpanah J., Kazemivash N. Phytochemistry, pharmacology and medicinal properties of Carthamus tinctorius L. Chin. J. Integr. Med. 2013;19:153-159. doi: 10.1007/s11655-013-1354-5. [DOI] [PubMed] [Google Scholar]. doi:10.1007/s11655-013-1354-5.
- 7.Han C., Yang P. Studies on the molecular mechanisms of seed germination. Proteomics. 2015;15:1671-1679. doi: 10.1002/pmic.201400375. [DOI] [PubMed] [Google Scholar]. doi:10.1002/pmic.201400375.
- 8.Bao Y., Liu X., Feng C.-H., Niu M.-X., Liu C., Wang H.-L., Yin W., Xia X. Light and Light Signals Regulate Growth and Development in Woody Plants. Forests. 2024;15:523. doi: 10.3390/f15030523. [DOI] [Google Scholar]. doi:10.3390/f15030523.
- 9.Gong D., He F., Liu J., Zhang C., Wang Y., Tian S., Sun C., Zhang X. Understanding of Hormonal Regulation in Rice Seed Germination. Life. 2022;12:1021. doi: 10.3390/life12071021. [DOI] [PMC free article] [PubMed] [Google Scholar]. doi:10.3390/life12071021.
- 10.Seo M., Nambara E., Choi G., Yamaguchi S. Interaction of light and hormone signals in germinating seeds. Plant Mol. Biol. 2009;69:463-472. doi: 10.1007/s11103-008-9429-y. [DOI] [PubMed] [Google Scholar]. doi:10.1007/s11103-008-9429-y.
- 11.Qu Y., Sakoda K., Wakabayashi Y., Nakajima M., Asami T., Terashima I., Yamori W. Identification and characterization of compounds that improve plant photosynthesis and growth under light stress conditions. Commun. Biol. 2025;8:300. doi: 10.1038/s42003-025-07582-2. [DOI] [PMC free article] [PubMed] [Google Scholar]. doi:10.1038/s42003-025-07582-2.
- 12.Moustaka J., Ouzounidou G., Sperdouli I., Moustakas M. Photosystem II Is More Sensitive than Photosystem I to Al3+ Induced Phytotoxicity. Materials. 2018;11:1772. doi: 10.3390/ma11091772. [DOI] [PMC free article] [PubMed] [Google Scholar]. doi:10.3390/ma11091772.
- Effect of Aqueous Extracts of Orange Peel Biochar on Seed Germination and Early Seedling Growth of Durum Wheat (Triticum durum Desf.) and Common Buckwheat (Fagopyrum esculentum Moench.) – PMC. Plants (Basel, Switzerland). DOI: 10.3390/plants15091292 · PMID: 42122786.
- 1.FAO Crops and Livestock Products. FAO; Rome, Italy: 2024. [Google Scholar].
- 2.Jiménez-Zamora A., Pastoriza S., Rufián-Henares J.A. Revalorization of Coffee By-Products. Prebiotic, Antimicrobial and Antioxidant Properties. LWT. 2015;61:12-18. doi: 10.1016/j.lwt.2014.11.031. [DOI] [Google Scholar]. doi:10.1016/j.lwt.2014.11.031.
- 3.Marín F.R., Soler-Rivas C., Benavente-García O., Castillo J., Pérez-Alvarez J.A. By-Products from Different Citrus Processes as a Source of Customized Functional Fibres. Food Chem. 2007;100:736-741. doi: 10.1016/j.foodchem.2005.04.040. [DOI] [Google Scholar]. doi:10.1016/j.foodchem.2005.04.040.
- 4.Cinardi G., D’Urso P.R., Cascone G., Arcidiacono C. Citrus Waste Valorisation Processes from an Environmental Sustainability Perspective: A Scoping Literature Review of Life Cycle Assessment Studies. AgriEngineering. 2025;7:335. doi: 10.3390/agriengineering7100335. [DOI] [Google Scholar]. doi:10.3390/agriengineering7100335.
- 5.Maqbool Z., Khalid W., Atiq H.T., Koraqi H., Javaid Z., Alhag S.K., Al-Shuraym L.A., Bader D.M.D., Almarzuq M., Afifi M., et al. Citrus Waste as Source of Bioactive Compounds: Extraction and Utilization in Health and Food Industry. Molecules. 2023;28:1636. doi: 10.3390/molecules28041636. [DOI] [PMC free article] [PubMed] [Google Scholar]. doi:10.3390/molecules28041636.
- 6.Bocco A., Cuvelier M.E., Richard H., Berset C. Antioxidant Activity and Phenolic Composition of Citrus Peel and Seed Extracts. J. Agric. Food Chem. 1998;46:2123-2129. doi: 10.1021/jf9709562. [DOI] [Google Scholar]. doi:10.1021/jf9709562.
- 7.Turk M.A., Tawaha A.M. Allelopathic Effect of Black Mustard (Brassica nigra L.) on Germination and Growth of Wild Oat (Avena fatua L.) Crop Prot. 2003;22:673-677. doi: 10.1016/S0261-2194(02)00241-7. [DOI] [Google Scholar]. doi:10.1016/S0261-2194(02)00241-7.
- 8.Xuan T.D., Shinkichi T., Khanh T.D., Chung I.M. Biological Control of Weeds and Plant Pathogens in Paddy Rice by Exploiting Plant Allelopathy: An Overview. Crop Prot. 2005;24:197-206. doi: 10.1016/j.cropro.2004.08.004. [DOI] [Google Scholar]. doi:10.1016/j.cropro.2004.08.004.
- rril P., Ghorbani M., Loppi S., Celletti S. Effect of Biochar Type, Concentration and Washing Conditions on the Germination Parameters of Three Model Crops. Plants. 2023;12:2235. doi: 10.3390/plants12122235. [DOI] [PMC free article] [PubMed] [Google Scholar]. doi:10.3390/plants12122235.
- 10.Fermoso J., Mašek O. Thermochemical Decomposition of Coffee Ground Residues by TG-MS: A Kinetic Study. J. Anal. Appl. Pyrolysis. 2018;130:358-367. doi: 10.1016/j.jaap.2017.12.007. [DOI] [Google Scholar]. doi:10.1016/j.jaap.2017.12.007.
- 11.European Biochar Foundation (EBC) EBC (2012-2025) “European Biochar Certificate, Guidelines for a Sustainable Production of Biochar”. European Biochar Foundation (EBC); Frick, Switzerland: 2025. [Google Scholar].
- 12.Tomczyk A., Sokołowska Z., Boguta P. Biochar Physicochemical Properties: Pyrolysis Temperature and Feedstock Kind Effects. Rev. Environ. Sci. Biotechnol. 2020;19:191-215. doi: 10.1007/s11157-020-09523-3. [DOI] [Google Scholar]. doi:10.1007/s11157-020-09523-3.
- Drought disrupts quinoa seed germination and seedling establishment via sugar metabolism and hormonal perturbations – PMC. BMC plant biology. DOI: 10.1186/s12870-026-09410-z · PMID: 42380773.
- audhary N, Walia S, Kumar R. Functional composition, physiological effect and agronomy of future food quinoa (Chenopodium quinoa Willd.): A review. J Food Compos Anal. 2023;118:105192. [Google Scholar].
- 2.Gómez MJR, Magro PC, Blázquez MR, Maestro-Gaitán I, Iñiguez FMS, Sobrado VC, Prieto JM. Nutritional composition of quinoa leafy greens: An underutilized plant-based food with the potential of contributing to current dietary trends. Food Res Int. 2024;178:113862. [DOI] [PubMed] [Google Scholar].
- 3.Lopez-Marques RL, Norrevang AF, Ache P, Moog M, Visintainer D, Wendt T, Osterberg JT, Dockter C, Jorgensen ME, Salvador AT, Hedrich R, Gao C, Jacobsen SE, Shabala S, Palmgren M. Prospects for the accelerated improvement of the resilient crop quinoa. J Exp Bot. 2020;71:5333-47. [DOI] [PMC free article] [PubMed] [Google Scholar].
- en X, Zhang YY, Cao BE, Wei XN, Shen ZG, Su NN. Assessment and comparison of nutritional qualities of thirty quinoa (Chenopodium quinoa Willd.) seed varieties. Food Chemistry: X. 2023;19:100808. [DOI] [PMC free article] [PubMed] [Google Scholar].
- 5.Ren AX, Zhao WF, Sumera A, Lin W, Ding PC, Hao RX, Wang PR, Zhong R, Tong J, Gao ZQ, Sun M. Effects of tillage and seasonal variation of rainfall on soil water content and root growth distribution of winter wheat under rainfed conditions of the Loess Plateau, China. Agr. Water Manage. 2022;268:107533. [Google Scholar].
- 6.Ma ZG, Bykova NV, Igamberdiev AU. Cell signaling mechanisms and metabolic regulation of germination and dormancy in barley seeds. Crop J. 2017;5:459-77. [Google Scholar].
- 7.Liu Y, Han CX, Deng X, Liu DM, Liu NN, Yan YM. Integrated physiology and proteome analysis of embryo and endosperm highlights complex metabolic networks involved in seed germination in wheat (Triticum aestivum L). J Plant Physiol. 2018;229:63-76. [DOI] [PubMed] [Google Scholar].
- 8.Hao YQ, Hong YC, Guo HM, Qin PY, Huang AC, Yang XS, Ren GX. Transcriptomic and metabolomic landscape of quinoa during seed germination. BMC Plant Biol. 2022;22:237. [DOI] [PMC free article] [PubMed] [Google Scholar].
- 9.Wei JX, Xu LH, Shi Y, Cheng TF, Tan WL, Zhao YG, Li CS, Yang XY, Ouyang LJ, Wei MK, Wang JX, Lu GY. Transcriptome profile analysis of Indian mustard (Brassica juncea L.) during seed germination reveals the drought stress-induced genes associated with energy, hormone, and phenylpropanoid pathways. Plant Physiol Bioch. 2023;200:107750. [DOI] [PubMed] [Google Scholar].
- 10.Kaur H, Manna M, Thakur T, Gautam V, Salvi P. Imperative role of sugar signaling and transport during drought stress responses in plants. Physiol Plant. 2021;171:833-48. [DOI] [PubMed] [Google Scholar].
- 11.Wang QC, Shi JR, Liu JN, Zhang P, Li L, Xie H, Li HX, Wang HX, Liu CH, Qin P. Integration of transcriptome and metabolome reveals the accumulation of related metabolites and gene regulation networks during quinoa seed development. Plant Mol Biol. 2024;114:10. [DOI] [PubMed] [Google Scholar].
- 12.Li CH, Wan YF, Shang XL, Fang SZ. Integration of transcriptomic and metabolomic analysis unveils the response mechanism of sugar metabolism in Cyclocarya paliurus seedlings subjected to PEG-induced drought stress. Plant Physiol Bioch. 2023;201:107856. [DOI] [PubMed] [Google Scholar].
- Bruno Nunez. Comment réussir tous ses semis au potager? Nos conseils. 2012.