Une jardinière fleurie réussie commence par l’emplacement, pas par le nuancier. Trois règles aident à choisir l’exposition, les couleurs et les ports, avec un piège : un catalogue de 2014 ne donne pas les disponibilités de 2026.
Sur une fenêtre, une terrasse ou le bord d’une allée, la jardinière concentre plusieurs contraintes dans peu de terre. Les plantes doivent partager la même lumière, composer avec un volume de substrat limité et conserver un port lisible au fil de l’été. Le rouge, le rose et le blanc peuvent très bien s’entendre sur le papier, mais les racines, elles, négocient autrement.
Un article de Jardipartage publié le 15 mars 2014 proposait six jeunes plants pour 12,50 euros dans une composition rose associant pétunias et lobularia. Ce prix ne permet plus d’établir un budget actuel. L’exemple reste utile pour une autre raison : il montre comment associer des plantes dont les couleurs, les textures et les ports ne racontent pas la même histoire.
La bonne composition commence donc par l’emplacement, avant de passer par le nuancier.
Le soleil en pot, ça ne se négocie pas
Photo de Yuliia Rohozna sur Unsplash.
Dans les faits, une composition annoncée pour le plein soleil doit être installée dans un endroit qui reçoit réellement cette lumière. Un rebord orienté au sud, une terrasse près d’un mur clair et une fenêtre sous un arbre ne donnent pas le même résultat. L’ombre portée d’un bâtiment change aussi entre le printemps et le coeur de l’été.
Le dossier de 2014 associait, dans la composition « Anaïs », un calibrachoa améthyste, un pétunia rose et un lobularia blanc pour une situation ensoleillée. Le même dossier indiquait qu’un lobélia rouge pouvait convenir à une suspension en mi-ombre. Ces exemples ne forment pas une règle valable pour toutes les variétés, mais ils montrent la limite du copier-coller végétal.
Pour éviter de choisir à l’envers, on peut procéder en trois temps :
observer l’emplacement et les périodes d’ombre avant l’achat;
retenir des plantes annoncées pour une exposition comparable;
vérifier ensuite le port adulte, la palette et la disponibilité des variétés.
La jardinière qui refuse de fleurir dans un coin sombre n’est pas forcément capricieuse. Le pot n’y est pour rien, cette fois. L’emplacement avait simplement un solide dossier.
Trois couleurs, zéro cacophonie
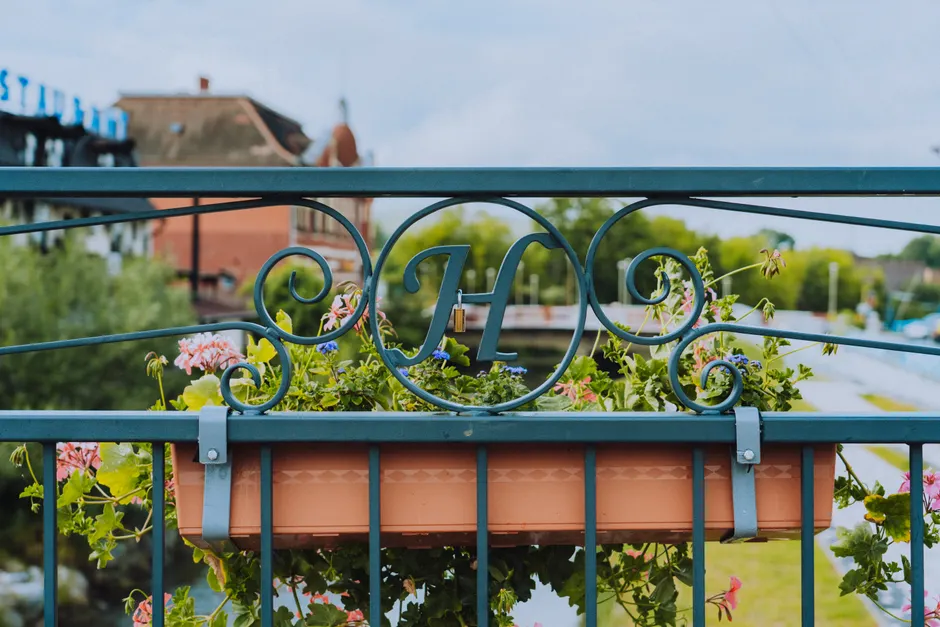
Photo de pure julia sur Unsplash.
Une jardinière lisible n’a pas besoin d’aligner six teintes. Les compositions présentées en 2014 jouaient souvent sur une couleur dominante, une couleur d’accompagnement et une touche plus claire. « Marianne » réunissait le bleu du lobélia, le blanc de la verveine et le rouge foncé du pétunia. « Julie » rapprochait plusieurs bleus de pétunias et de lobélias avec une touche blanche.
La collection « Symphonie rose » suivait une autre logique : pétunias rose pastel, rose soutenu et rose presque fuchsia, avec un lobularia pour alléger l’ensemble. Ce camaïeu limite les ruptures visuelles, mais il impose de vérifier les cultivars disponibles. Un pétunia vendu comme rose peut changer nettement de nuance selon la gamme proposée.
Le contraste peut aussi venir de la texture. Dans « Marilou », les grandes fleurs doubles de deux pétunias étaient associées à un géranium blanc rosé et à un hélichrysum doré. La différence ne venait donc pas uniquement de la couleur : les fleurs, le feuillage et les formes donnaient chacun une information.
Le pot qui prend la grosse tête
Photo de David Trinks sur Unsplash.
Dans une jardinière, le port compte autant que la fleur. Une plante dressée attire le regard vers le centre ou l’arrière, tandis qu’une plante retombante modifie la silhouette sur les bords. Les compositions de 2014 mélangeaient déjà pétunias, lobélies, calibrachoa et lobularia pour obtenir du relief sans ajouter une nouvelle couleur à chaque emplacement.
La lumière ne se répartit pas toujours comme on l’imagine. Une étude publiée en 2021 dans International Journal of Molecular Sciences a comparé, en environnement contrôlé, un éclairage par le dessus, le côté et le dessous chez deux cultivars de chrysanthème, « Gaya Glory » et « Pearl Egg ». Les boutures enracinées ont reçu 10 heures de lumière par jour, avec un flux de 300 micromoles par mètre carré et par seconde. Les plantes éclairées par le côté ont présenté davantage de croissance, de ramifications et de fleurs que celles éclairées par le dessus ou par le dessous.
Cette étude porte sur deux cultivars de chrysanthème dans un dispositif contrôlé. Elle ne justifie pas l’installation d’une rampe LED sur chaque jardinière et ne permet pas de promettre le même effet chez les pétunias ou les géraniums. Elle rappelle seulement que la direction de la lumière modifie la croissance.
En extérieur, une jardinière placée contre un mur peut présenter une face très éclairée et une autre moins exposée. Il faut donc observer la plante après son installation. Si le feuillage se développe d’un seul côté, la lumière n’est pas répartie comme prévu. Le potager miniature tourne alors au théâtre d’ombres, avec les fleurs en figurantes.
Le port adulte et la répartition de la lumière comptent autant que la fleur ouverte le jour de l’achat.
Quand le catalogue met les pieds dans le terreau
Photo de Amy W. sur Unsplash.
Les compositions anciennes ont une qualité rare : elles montrent des associations concrètes. Elles ont aussi une limite nette. « Anaïs », « Marianne », « Julie », « Symphonie rose » et « Marilou » étaient des noms de collections, pas des principes botaniques durables.
Le contenu publié en 2014 indique que l’enseigne Jardin Express a fermé à la fin de l’été 2019. Les plantes de ces compositions peuvent encore exister dans des jardineries, mais parfois sous d’autres noms de variétés. Présenter ces collections comme une offre actuelle serait donc trompeur.
Pour composer aujourd’hui, mieux vaut reprendre la logique que le nom : une base colorée, une plante qui apporte une autre forme, une touche claire et une exposition compatible. Le prix de 12,50 euros pour six jeunes plants situe une proposition commerciale de 2014; il ne calcule pas le budget d’une jardinière en 2026.
Alors, faut-il choisir d’abord la couleur ou la lumière? Pour une fois, le soleil tranche. Les pétunias peuvent jouer les vedettes, le lobularia faire les choeurs et le lobélia voler la scène, mais aucun ne négocie longtemps avec un emplacement qui ne lui convient pas.
Sources et références scientifiques
Bennetzen JL, Wang X.. Relationships between Gene Structure and Genome Instability in Flowering Plants.. Molecular plant. 2018. DOI: 10.1016/j.molp.2018.02.003 · PMID: 29462722. (résumé scientifique structuré; texte intégral non fourni)
The SvFUL2 transcription factor is required for inflorescence determinacy and timely flowering in Setaria viridis – PMC. Plant physiology. DOI: 10.1093/plphys/kiab169 · PMID: 33871654.
Acharya BR, Roy CS, Estelle AB, Vijayakumar A, Zhu C, Hovis L, Pandey S (2017) Optimization of phenotyping assays for the model monocot Setaria viridis. Front Plant Sci 8: 2172. [DOI] [PMC free article] [PubMed] [Google Scholar].
Alvarez-Buylla ER, García-Ponce B, Garay-Arroyo A (2006) Unique and redundant functional domains of APETALA1 and CAULIFLOWER, two recently duplicated Arabidopsis thaliana floral MADS-box genes. J Exp Bot 57: 3099-3107 [DOI] [PubMed] [Google Scholar].
Alvarez J, Guli CL, Yu XH, Smyth DR (1992) terminal flower: a gene affecting inflorescence development in Arabidopsis thaliana. Plant J 2: 103-116 [Google Scholar].
Ambrose BA, Lerner DR, Ciceri P, Padilla CM, Yanofsky MF, Schmidt RJ (2000) Molecular and genetic analyses of the silky1 gene reveal conservation in floral organ specification between eudicots and monocots. Mol Cell 5: 569-579 [DOI] [PubMed] [Google Scholar].
Bai F, Reinheimer R, Durantini D, Kellogg EA, Schmidt RJ (2012) TCP transcription factor, BRANCH ANGLE DEFECTIVE 1 (BAD1), is required for normal tassel branch angle formation in maize. Proc Natl Acad Sci USA 109: 12225-12230 [DOI] [PMC free article] [PubMed] [Google Scholar].
Benlloch R, Berbel A, Serrano-Mislata A, Madueno F (2007) Floral Initiation and Inflorescence Architecture: A Comparative View. Ann Bot 100: 1609-1609 [DOI] [PMC free article] [PubMed] [Google Scholar].
Boden SA, Cavanagh C, Cullis BR, Ramm K, Greenwood J, Jean Finnegan E, Trevaskis B, Swain SM (2015) Ppd-1 is a key regulator of inflorescence architecture and paired spikelet development in wheat. Nat Plants 1: 14016. [DOI] [PubMed] [Google Scholar].
Bolduc N, Yilmaz A, Mejia-Guerra MK, Morohashi K, O’Connor D, Grotewold E, Hake S (2012) Unraveling the KNOTTED1 regulatory network in maize meristems. Genes Dev 26: 1685-1690 [DOI] [PMC free article] [PubMed] [Google Scholar].
Bommert P, Whipple C (2018) Grass inflorescence architecture and meristem determinacy. Semin Cell Dev Biol 79: 37-47 [DOI] [PubMed] [Google Scholar].
Bortiri E, Chuck G, Vollbrecht E, Rocheford T, Martienssen R, Hake S (2006) ramosa2 encodes a LATERAL ORGAN BOUNDARY domain protein that determines the fate of stem cells in branch meristems of maize. Plant Cell 18: 574-585 [DOI] [PMC free article] [PubMed] [Google Scholar].
Bowman JL, Alvarez J, Weigel D, Meyerowitz EM, Smyth DR (1993) Control of flower development in Arabidopsis thaliana by APETALA1 and interacting genes. Development 119: 721-743 [Google Scholar].
Bradley D, Ratcliffe O, Vincent C, Carpenter R, Coen E (1997) Inflorescence commitment and architecture in Arabidopsis. Science 275: 80-83 [DOI] [PubMed] [Google Scholar].
Mosaic Arrangement of the 5S rDNA in the Aquatic Plant Landoltia punctata (Lemnaceae) – PMC. Frontiers in plant science. DOI: 10.3389/fpls.2021.678689 · PMID: 34249048.
Allaby R. G., Brown T. A. (2001). Network analysis provides insights into evolution of 5S rDNA arrays in Triticum and Aegilops. Genetics 157, 1331-1341. 10.1093/genetics/157.3.1331, PMID: [DOI] [PMC free article] [PubMed] [Google Scholar]. doi:10.1093/genetics/157.3.1331.
Appenroth K. J., Borisjuk N., Lam E. (2013). Telling duckweed apart: genotyping technologies for the Lemnaceae. Chin. J. Appl. Environ. Biol. 19, 1-10. 10.3724/SP.J.1145.2013.00001 [DOI] [Google Scholar]. doi:10.3724/SP.J.1145.2013.00001.
Appenroth K. J., Crawford D. J., Les D. H. (2015). After the genome sequencing of duckweed – how to proceed with research on the fastest growing angiosperm? Plant Biol. 17, 1-4. 10.1111/plb.12248, PMID: [DOI] [PubMed] [Google Scholar]. doi:10.1111/plb.12248.
Baker W. J., Hedderson T. A., Dransfield J. (2000). Molecular phylogenetics of Calamus (Palmae) and related rattan genera based on 5S nrDNA spacer sequence data. Mol. Phylogenet. Evol. 14, 218-231. 10.1006/mpev.1999.0697, PMID: [DOI] [PubMed] [Google Scholar]. doi:10.1006/mpev.1999.0697.
Baum B. R., Feldman M. (2010). Elimination of 5S DNA unit classes in newly formed allopolyploids of the genera Aegilops and Triticum. Genome 53, 430-438. 10.1139/G10-017, PMID: [DOI] [PubMed] [Google Scholar]. doi:10.1139/G10-017.
Borisjuk N., Chu P., Gutierrez R., Zhang H., Acosta K., Friesen N., et al. (2015). Assessment, validation and deployment strategy of a two-barcode protocol for facile genotyping of duckweed species. Plant Biol. 17, 42-49. 10.1111/plb.12229, PMID: [DOI] [PubMed] [Google Scholar]. doi:10.1111/plb.12229.
Borisjuk N., Davidjuk I., Kostishin S., Miroshnichenko G., Velasko R., Hemleben V., et al. (1997). Structural analysis of rDNA in the genus Nicotiana. Plant Mol. Biol. 35, 655-660. 10.1023/A:1005856618898, PMID: [DOI] [PubMed] [Google Scholar]. doi:10.1023/A:1005856618898.
Borisjuk N., Hemleben V. (1993). Nucleotide sequence of the potato rDNA intergenic spacer. Plant Mol. Biol. 21, 381-384. [DOI] [PubMed] [Google Scholar].
Borisjuk N. V., Momot V. P., Gleba Y. (1988). Novel class of rDNA repeat units in somatic hybrids between Nicotiana and Atropa. Theor. Appl. Genet. 76, 108-112. 10.1007/BF00288839, PMID: [DOI] [PubMed] [Google Scholar]. doi:10.1007/BF00288839.
Borisjuk N., Peterson A., Lv J., Qu G., Luo Q., Chen G., et al. (2018). Structural and biochemical properties of duckweed surface cuticle. Front. Chem. 6:317. 10.3389/fchem.2018.00317, PMID: [DOI] [PMC free article] [PubMed] [Google Scholar]. doi:10.3389/fchem.2018.00317.
Brázda V., Kolomazník J., Lýsek J., Bartas M., Fojta M., Šťastný J., et al. (2019). G4Hunter web application: a web server for G-quadruplex prediction. Bioinformatics 35, 3493-3495. 10.1093/bioinformatics/btz087, PMID: [DOI] [PMC free article] [PubMed] [Google Scholar]. doi:10.1093/bioinformatics/btz087.
Cao H. X., Fourounjian P., Wang W. (2018). “The importance and potential of duckweeds as a model and crop plant for biomass-based applications and beyond,” in Handbook of Environmental Materials Management. ed. Hussain C. (Cham: Springer; ), 1-16. [Google Scholar].
Side Lighting Enhances Morphophysiology by Inducing More Branching and Flowering in Chrysanthemum Grown in Controlled Environment – PMC. International journal of molecular sciences. DOI: 10.3390/ijms222112019 · PMID: 34769450.
1.Tian F. Ph.D. Thesis. Université Paul Sabatier-Toulouse III; Toulouse, France: 2016. Study and Optimization of Lighting Systems for Plant Growth in a Controlled Environment. [Google Scholar].
2.Mcnellis T.W., Deng X.W. Light control of seedling morphogenetic pattern. Plant Cell. 1995;7:1749-1761. doi: 10.1105/tpc.7.11.1749. [DOI] [PMC free article] [PubMed] [Google Scholar]. doi:10.1105/tpc.7.11.1749.
en M., Chory J., Fankhauser C. Light signal transduction in higher plants. Annu. Rev. Genet. 2004;38:87-117. doi: 10.1146/annurev.genet.38.072902.092259. [DOI] [PubMed] [Google Scholar]. doi:10.1146/annurev.genet.38.072902.092259.
4.Ahmed H.A., Tong Y.X., Yang Q.C. Optimal control of environmental conditions affecting lettuce plant growth in a controlled environment with artificial lighting: A review. S. Afr. J. Bot. 2020;130:75-89. doi: 10.1016/j.sajb.2019.12.018. [DOI] [Google Scholar]. doi:10.1016/j.sajb.2019.12.018.
5.Schneider S.C., Pichler D.E., Andersen T., Melzer A. Light acclimation in submerged macrophytes: The roles of plant elongation, pigmentation and branch orientation differ among Chara species. Aquat. Bot. 2015;120:121-128. doi: 10.1016/j.aquabot.2014.05.002. [DOI] [Google Scholar]. doi:10.1016/j.aquabot.2014.05.002.
6.Kendrick R.E., Kronenberg G.H. Photomorphogenesis in Plants. 2nd ed. Springer Science & Business Media; Berlin, Germany: 2012. [Google Scholar].
8.Kume A., Akitsu T., Nasahara K.N. Why is chlorophyll b only used in light-harvesting systems? J. Plant Res. 2018;131:961-972. doi: 10.1007/s10265-018-1052-7. [DOI] [PMC free article] [PubMed] [Google Scholar]. doi:10.1007/s10265-018-1052-7.
9.Ruberti I., Sessa G., Ciolfi A., Possenti M., Carabelli M., Morelli G. Plant adaptation to dynamically changing environment: The shade avoidance response. Biotechnol. Adv. 2012;30:1047-1058. doi: 10.1016/j.biotechadv.2011.08.014. [DOI] [PubMed] [Google Scholar]. doi:10.1016/j.biotechadv.2011.08.014.
10.Keuskamp D.H., Sasidharan R., Pierik R. Physiological regulation and functional significance of shade avoidance responses to neighbors. Plant Signal. Behav. 2010;5:655-662. doi: 10.4161/psb.5.6.11401. [DOI] [PMC free article] [PubMed] [Google Scholar]. doi:10.4161/psb.5.6.11401.
11.Aphalo P.J., Ballare C.L., Scopel A.L. Plant-plant signalling, the shade-avoidance response and competition. J. Exp. Bot. 1999;50:1629-1634. doi: 10.1093/jxb/50.340.1629. [DOI] [Google Scholar]. doi:10.1093/jxb/50.340.1629.
12.Yang F., Fan Y., Wu X., Cheng Y., Liu Q., Feng L., Chen J., Wang Z., Wang X., Yong T. Auxin to gibberellin ratio as a signal for light intensity and quality in regulating soybean growth and matter partitioning. Front. Plant Sci. 2018;9:56. doi: 10.3389/fpls.2018.00056. [DOI] [PMC free article] [PubMed] [Google Scholar]. doi:10.3389/fpls.2018.00056.
Bruno Nunez. 5 compositions pour une jardinière fleurie l’été prochain!. 2014.
Eric est jardinier passionné depuis 22 ans. Il partage régulièrement ses conseils et astuces de jardinage sur son blog "Jardin-Bio", pour aider les débutants comme les jardiniers confirmés à entretenir et faire évoluer leur jardin.